איך צוללים מאה מטר על נשימה אחת?
 איך צוללים מאה מטר על נשימה אחת?
תוכן העניינים
צוללן צף על פני המים, מעל חבל שיורד אל תוך הכחול. הוא נושם נשימה אחרונה, מתהפך, ומתחיל לרדת. בעשרת המטרים הראשונים הוא חותר בכוח, ונדמה שהמים מנסים לדחוף אותו בחזרה החוצה. אחרי עשרים מטרים הוא מפסיק לחתור, מצמיד את הידיים לגוף, ופשוט נופל. בארבעים מטרים הריאות שלו תופסות חמישית מהנפח שהיה להן למעלה, והלב שלו פועם לאט. והקטע המסוכן ביותר בצלילה עוד לפניו: לא הקרקעית, אלא עשרת המטרים האחרונים, רגע לפני שהוא חוזר לאוויר. לפני שבעים שנה, חשבון פשוט לפי חוק בויל נראה כמו הוכחה שאדם לא יכול לצלול על נשימה אחת עמוק יותר משלושים או ארבעים מטרים, כי הריאות שלו יימעכו. היום צוללים עוברים מאה מטרים.
בפוסט הזה נצלול איתו, מטר אחרי מטר, וננסה להבין את כל מה שקורה לו בדרך. נתחיל במים עצמם: כמה הם לוחצים, ולמה הגוף כמעט לא מרגיש את זה, בזמן שכל חלל שיש בו אוויר מרגיש את זה מאוד. נראה למה המטרים הקשים ביותר לאוזניים הם הראשונים, איך החשבון שקבע גבול של שלושים מטרים נכשל ומה הוא לא ידע, ולמה צוללן נופל בלי לחתור. אחר כך נעבור מהפיזיקה לגוף: כמה חמצן יש בנשימה אחת, איך הגוף עובר למצב של חיסכון, ומה בכלל גורם לנו לרצות לנשום. ובסוף נחזור לפיזיקה, כדי להבין למה דווקא הדרך למעלה מסוכנת, ולמה גם צלילה על נשימה אחת יכולה לגרום למחלת הצוללים. מה שצריך להביא הוא פיזיקה של תיכון: לחץ, כוח ציפה ומשוואת הגז האידיאלי. את הביולוגיה נבנה בדרך.
כמו בפוסטים הקודמים, מדי פעם תופיע תיבה שכתוב עליה «צלילה לעומק», והפעם השם מתאים במיוחד. יש בה החשבון המלא או הנימוק המדויק. הטקסט הראשי אף פעם לא נשען עליה, ואפשר לדלג עליה בקריאה ראשונה בלי לאבד את החוט. תיבות «מן ההיסטוריה» מספרות מי גילה מה, ומתי. ההמחשות מריצות מודל מחושב של צוללן אחד, ובחלק מהן מופיעות גם מדידות של צוללנים אמיתיים. מה המודל יודע ומה הוא לא יודע, מפורט בסוף.
ודבר אחד לפני שיורדים: זה פוסט על פיזיקה ועל פיזיולוגיה, לא מדריך לצלילה. בהמשך נראה במספרים למה אף אחד לא צולל בלי מישהו שמשגיח עליו מתוך המים, ולמה נשימות מהירות ועמוקות לפני צלילה הן רעיון מסוכן.
עשרה מטרים של מים
נתחיל מהשאלה הבסיסית ביותר: כמה המים לוחצים על הצוללן?
לחץ הוא כוח חלקי שטח. דמיינו עמוד של מים שהבסיס שלו מטר רבוע, והוא מתנשא מעל הצוללן עד פני המים, לגובה . הנפח של העמוד הוא מטרים מעוקבים, המסה שלו היא הנפח כפול צפיפות המים , והמשקל שלו הוא המסה כפול תאוצת הכובד . כל המשקל הזה נשען על המטר הרבוע שבבסיס. ומעל המים יש עוד עמוד, של אוויר, שלוחץ בגובה פני הים בלחץ של אטמוספירה אחת, 101.325 קילופסקל. נסמן אותו . הלחץ המוחלט בעומק הוא אם כן
כמה מים צריך כדי להוסיף אטמוספירה שלמה? זה תלוי בצפיפות, והצפיפות של מי ים תלויה במליחות ובטמפרטורה. יש לזה משוואת מצב בינלאומית, של UNESCO, שמחשבת את הצפיפות משני הנתונים האלה. באילת, באוגוסט, המים בפני הים חמים, 27.5 מעלות בממוצע של השיא היומי לפי בלוורת’י ועמיתיו, והמליחות שלהם 41: בערך 41 גרם של מלחים בכל קילוגרם של מי ים. לפי המשוואה הצפיפות שלהם 1027.1 קילוגרמים למטר מעוקב, ואטמוספירה נוספת מתווספת כל 10.06 מטרים. בים התיכון מול חדרה, באוגוסט, 1025.1 ו-10.08 מטרים, ובמים מתוקים, ב-25 מעלות, 997.0 ו-10.36 מטרים. במילים אחרות: כל עשרה מטרים של מים מוסיפים אטמוספירה.
בעשרה מטרים הלחץ כמעט כפול מבפני המים, 1.99 אטמוספירות. בארבעים מטרים הוא 4.98, ובמאה מטרים 10.94. לחץ האוויר בפני הים שקול למשקל של קילוגרם אחד, בערך, על כל סנטימטר רבוע; במאה מטרים המים מוסיפים על זה עוד 10.27 קילוגרמים לכל סנטימטר רבוע של עור.
ובאילת, אגב, לא צריך סירה כדי להגיע לעומק. לפי המכון הבין-אוניברסיטאי למדעי הים באילת, העומק הממוצע של המפרץ כ-800 מטרים, והמקסימלי 1,850, ו«כמעט אין מדף יבשתי»: הקרקעית יורדת בחדות כבר מהחוף.
אז למה הצוללן לא נמעך? כי הוא עשוי כמעט כולו מים ומרקמות, והם כמעט לא נדחסים. לחץ שפועל על גוף מכל הכיוונים לא מזיז אותו לשום מקום, והוא גם כמעט לא מקטין אותו: בעומק מאה מטרים המים עצמם נעשים צפופים בפחות מאלפית (ראו בתיבה). מה שכן מרגיש את הלחץ הוא כל מקום בגוף שיש בו גז: הריאות, הסינוסים, האוזן התיכונה, וגם האוויר שבמסכה ובבועות הזעירות של חליפת הצלילה. גז נדחס בקלות, וכל הסיפור של הפוסט הזה מתחיל כאן.
ועוד חידה קטנה לפני שיורדים באמת: למה אי אפשר לשכב בקרקעית של בריכה, בעומק מטר וחצי, ולנשום דרך צינור ארוך? האוויר בצינור מגיע מלמעלה, בלחץ של אטמוספירה. אבל על בית החזה לוחצים המים, בלחץ גבוה יותר, וכדי לשאוף, שרירי הנשימה צריכים להרחיב את בית החזה נגד ההפרש. כמה הם מסוגלים? הופשטיין ועמיתיו מדדו ב-1986 את לחץ השאיפה המרבי של 60 מבוגרים בריאים, בני 21 עד 40: בממוצע 129 סנטימטרים של מים אצל גברים, ו-91 אצל נשים. סנטימטר של מים הוא הלחץ של עמוד מים בגובה סנטימטר, ולכן אלה לחצים של 12.65 ו-8.92 קילופסקל, השקולים לעומק של 1.26 ו-0.89 מטרים של מי ים. וזה מאמץ מרבי, לרגע אחד; לנשום כך שוב ושוב קשה בהרבה. (זה החשבון שלנו, לא מדידה של צינור נשימה.)
לפני ההמחשה, נחשו: בלון שמילאו בשישה ליטרים של אוויר על פני המים יורד לעומק עשרה מטרים. כמה ליטרים יישארו בו? ובעומק מאה?
לחץ ונפח, מטר אחרי מטר
הזיזו את העומק. הגרף הראשון מראה את הלחץ המוחלט, השני מה קורה לבלון שמילאו בשישה ליטרים של אוויר על פני המים. בשניהם העומק גדל כלפי מטה, כמו במים.
הלחץ המוחלט, באטמוספירות
נפח הבלון, בליטרים
העומק, במטרים, על הציר האנכי
חישוב, לא מדידה. צפיפות המים מחושבת ממשוואת המצב של UNESCO למי ים, לפי המליחות והטמפרטורה של אוגוסט: 1027.1 ק״ג למטר מעוקב באילת, 1025.1 בחדרה ו-997.0 במים מתוקים ב-25 מעלות. בכל אחד מהם הלחץ עולה באטמוספירה כל 10.06, 10.08 ו-10.36 מטרים, בהתאמה. הדחיסות של המים עצמם זניחה, ואינה בחשבון. המספר של עור התוף הוא ההפרש בין הלחץ במים ללחץ באוזן התיכונה, אם לא השוו לחצים מאז פני המים. לפי סקירה של גלייזר וטליאן, כאב מתחיל בהפרש של 60 מילימטר כספית, ובהפרש של 90 חצוצרת השמע כבר לא נפתחת.
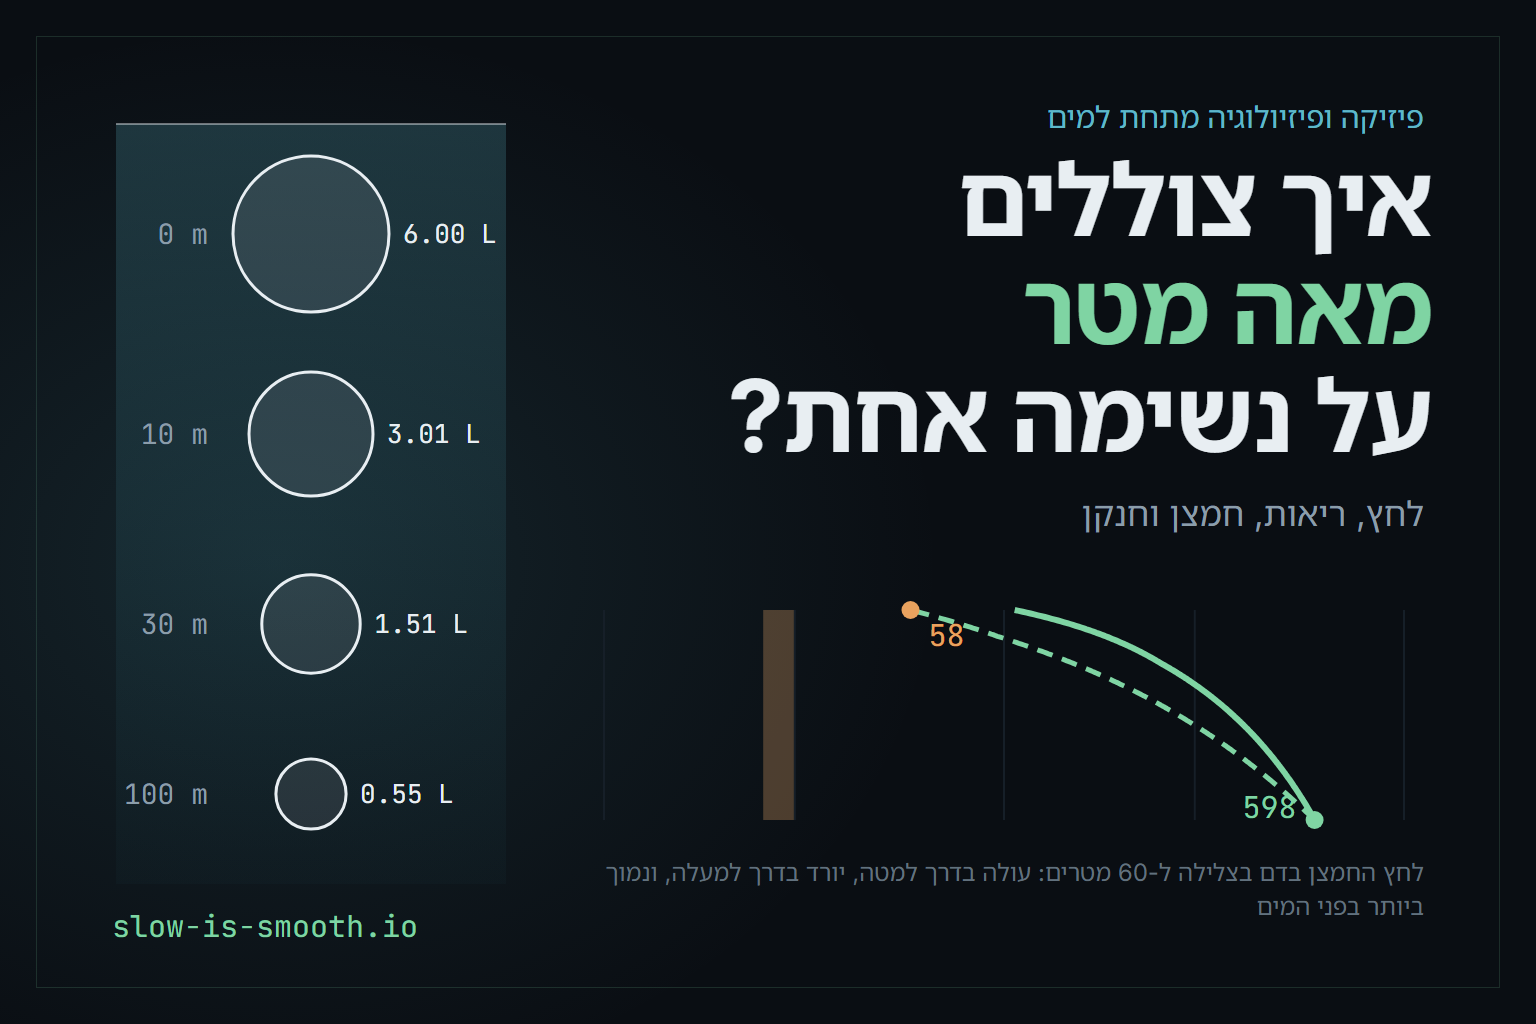
בעשרה מטרים הבלון מחזיק 3.01 ליטרים, כמעט בדיוק חצי. במאה מטרים, 0.55: פחות מעשירית. הנה כמה ערכים, במי ים של אילת:
| עומק | לחץ מוחלט, אטמוספירות | נפח הבלון, ליטרים | מתוך הנפח שעל פני המים |
|---|---|---|---|
| פני המים | 1.00 | 6.00 | 100% |
| 10 מטרים | 1.99 | 3.01 | 50% |
| 20 מטרים | 2.99 | 2.01 | 33% |
| 30 מטרים | 3.98 | 1.51 | 25% |
| 40 מטרים | 4.98 | 1.21 | 20% |
| 60 מטרים | 6.96 | 0.86 | 14% |
| 100 מטרים | 10.94 | 0.55 | 9% |
בויל, והמטרים הראשונים
למה הבלון מתכווץ בדיוק כך? כי הגז שבו מציית לחוק בויל: כשהטמפרטורה וכמות הגז קבועות, מכפלת הלחץ בנפח קבועה, ולכן
החוק הזה הוא מקרה פרטי של משוואת הגז האידיאלי, . הלחץ של גז הוא הממוצע של אינספור התנגשויות של מולקולות בדפנות. אם דוחסים את אותן מולקולות, באותה טמפרטורה, לנפח קטן פי שניים, כל דופן נפגעת פי שניים יותר פעמים, והלחץ מוכפל. את הגזירה המלאה, מהתנגשות אחת ועד לחץ, אפשר למצוא בפרק על המקור המיקרוסקופי של הלחץ בקורס התרמודינמיקה של ThermoLab. אצל צוללן, התנאי של טמפרטורה קבועה מתקיים יפה: הגז שבריאות נמצא כל הזמן ב-37 מעלות.
עכשיו הנקודה החשובה. הנפח תלוי ביחס בין הלחצים, לא בהפרש ביניהם. בעשרת המטרים הראשונים הלחץ עולה מאטמוספירה אחת לשתיים, כלומר מוכפל, והנפח קטן בחצי. בעשרת המטרים הבאים הלחץ עולה משתיים לשלוש, רק פי אחד וחצי, והנפח קטן בשליש. ובין 90 ל-100 מטרים הלחץ עולה מ-9.95 ל-10.94 אטמוספירות, והנפח קטן רק ב-9.1 אחוזים. כמה מהנפח הולך בכל מטר? גוזרים את חוק בויל, ומקבלים
השינוי היחסי בנפח, בכל מטר, הפוך ללחץ שבו נמצאים. המטר הראשון לוקח 9.0 אחוזים מהנפח, המטר שמתחת לעשרה מטרים 4.7 אחוזים, והמטר שמתחת ל-99 מטרים 0.9 אחוזים בלבד. ככל שיורדים, כל מטר משנה פחות. ובגלל זה המטרים הקשים ביותר לכל חלל של אוויר בגוף הם הראשונים.
הראשונה שמרגישה את זה היא האוזן. מאחורי עור התוף יש חלל קטן מלא אוויר, האוזן התיכונה, והוא מחובר לגרון בצינור צר, חצוצרת השמע. כשהצוללן יורד, המים לוחצים על עור התוף מבחוץ, והאוויר שבפנים נשאר בלחץ של פני המים. כדי להשוות את הלחצים, צריך להכניס לאוזן התיכונה אוויר מהגרון, דרך החצוצרה. לפי סקירה של גלייזר וטליאן על פגיעות אוזניים בצלילה, כאב מתחיל כשההפרש מגיע ל-60 מילימטר כספית, וכשהוא מגיע ל-90, החצוצרה כבר לא נפתחת, והצוללן צריך לעלות קצת כדי להשוות לחצים. מילימטר כספית הוא הלחץ של עמוד כספית בגובה מילימטר. 90 מהם הם 12 קילופסקל, ובמי ים זה עומק של 1.19 מטרים בלבד. הכאב מתחיל עוד קודם, ב-79 סנטימטרים. לכן משווים לחצים מההתחלה, ושוב ושוב.
יש שתי דרכים עיקריות לעשות את זה. בתמרון ולסלבה סוגרים את האף ונושפים לתוכו. לפי ארגון הבטיחות בצלילה DAN, הלחץ שנוצר בגרון דוחף אוויר אל החצוצרות, אבל נשיפה חזקה מדי עלולה לקרוע את החלונות העגול והסגלגל של האוזן הפנימית. בתמרון פרנצל סוגרים את האף ואת החלק האחורי של הגרון, ומשמיעים את הצליל של האות K: הלשון עולה, ודוחסת את האוויר שבפה אל פתחי החצוצרות. ההבדל ביניהם חשוב בעומק. ולסלבה צריכה אוויר שנדחף מהריאות, ובעומק הריאות כבר דחוסות. לפי טצלף ועמיתיו, בעומק רב שרירי הנשימה כבר לא מסוגלים לספק את הכוח הדרוש. לוריג ועמיתיו תיארו ב-2007 טכניקה שבה צוללני עומק «שואבים» אוויר מהריאות הדחוסות אל הלוע, בדרך למטה, כדי שיהיה להם אוויר להשוואת הלחצים באוזן התיכונה.
ומה אם לא משווים? טלאס ועמיתיו מדדו ב-2021 את ההפרש שבו נקרע עור התוף, ב-20 אוזניים של גופות. בממוצע הוא נקרע בהפרש של 97.7 קילופסקל, השקול לעומק של 9.7 מטרים, אבל הערך הנמוך ביותר היה 35.8, השקול ל-3.55 מטרים. הכותבים עצמם ממליצים להתייחס לערכים הנמוכים, ולא לממוצע, כשקובעים סף של סכנה.
גם המסכה היא חלל של אוויר. בעשרה מטרים הנפח של האוויר שבה קטן בחצי, ואם לא מוסיפים לה אוויר מהאף, היא נצמדת לפנים ומושכת אליה את הרקמות. ועל האוויר שבריאות נדבר בפרק הבא.
הגבול של שלושים מטרים
כמה אוויר יש בריאות? הנפח שלהן אחרי שאיפה מלאה נקרא נפח הריאות הכולל, ולפי StatPearls הממוצע אצל מבוגרים בריאים הוא כשישה ליטרים. גם אחרי נשיפה מלאה הריאות לא מתרוקנות: נשאר בהן הנפח השיורי. לפי סקוט ועמיתיו הוא 20 עד 30 אחוזים מהנפח הכולל. לצוללן שלנו ניתן ריאות של 6.0 ליטרים ונפח שיורי של 1.5 ליטרים, רבע.
ועכשיו החשבון שהטריד את הפיזיולוגים של שנות החמישים. הצוללן ממלא את הריאות על פני המים ויורד. לפי חוק בויל, בעומק מסוים הן יידחסו עד הנפח השיורי. מה קורה אם הוא ממשיך? לפי הסקירה של טצלף ועמיתיו מ-2021, «האמינו באופן כללי» שהעומק המרבי של צלילה על נשימה אחת נקבע בדיוק כאן, ביחס בין הנפח השיורי לנפח הכולל. מעבר לעומק הזה, המחשבה הייתה, הלחץ שבחוץ יפעל על ריאות שלא יכולות להתכווץ עוד, ויפגע בהן. את הרעיון הם מייחסים לקרי ועמיתיו מ-1956 ולאגוסטוני מ-1965.
החשבון עצמו קצר. הריאות נדחסות עד הנפח השיורי כש-, כלומר כשהלחץ המוחלט מגיע ל-. כאן הוא הנפח הכולל ו- השיורי. מציבים בנוסחה של הלחץ, ומקבלים את העומק:
הביטוי הוא בדיוק «עשרת המטרים לאטמוספירה» מהפרק הקודם. אצל הצוללן שלנו היחס הוא 4, ולכן הגבול הוא שלוש אטמוספירות של מים: 30.2 מטרים במי ים של אילת, ו-31.1 במים מתוקים. אם הנפח השיורי שלו היה 20 אחוזים, הגבול היה 40.2 מטרים, ואם 30 אחוזים, 23.5.
הבעיה עם החשבון היא שהצוללנים לא הקשיבו לו. לפי טצלף ועמיתיו, האיטלקי אנצו מאיורקה עבר את 50 המטרים כבר ב-1960. צוללן חיל הים האמריקאי רוברט קרופט, שהריאות שלו היו גדולות במיוחד, 9.1 ליטרים עם נפח שיורי של 1.3, היה צריך לפי אותו חשבון לעצור ב-60.4 מטרים, וב-1968 הגיע ל-66. באותה שנה עבר הצרפתי ז’אק מאיול את 70 המטרים, אף שלפי נפחי הריאות שלו, 7.22 ליטרים ונפח שיורי של 1.88, הוא היה אמור להיעצר ב-28.6. וב-1976 הגיע מאיול למאה מטרים.
מה החשבון פספס? את התשובה מדדו קרל שייפר ועמיתיו, וקרופט היה אחד הנבדקים. במאמר שפרסמו ב-Science ב-1968 הם מתארים צלילות במכל אימונים עד עומק של 90 רגל, וצלילות של קרופט בים הפתוח לעומק של 217.5 ו-225 רגל, 66.3 ו-68.6 מטרים. בעזרת מכשיר שמודד שינויים בהתנגדות החשמלית של בית החזה, הם מדדו כמה דם נכנס לבית החזה בעומקים שונים. בעומק 90 רגל, 27.4 מטרים, «נדחסו לבית החזה» 1,047 מיליליטר של דם, ובעומק 130 רגל, 39.6 מטרים, 850 מיליליטר.
זה מעבר הדם אל בית החזה. כשהריאות נדחסות, הלחץ בבית החזה נעשה נמוך מהלחץ שבשאר הגוף, ודם זורם אליו מהגפיים ומהבטן וממלא את כלי הדם שבריאות ובסביבתן. ודם, בניגוד לאוויר, הוא נוזל, ולא נדחס. כל מיליליטר של דם שנכנס תופס מקום שהגז היה צריך לתפוס, ולכן הגז יכול להמשיך להידחס אל מתחת לנפח השיורי בלי שבית החזה עצמו יתכווץ עוד. בחשבון שלנו זה פשוט: מחסירים את הדם מהנפח השיורי. אצל הצוללן שלנו, 1,047 מיליליטר של דם מזיזים את הגבול מ-30.2 ל-123.2 מטרים. כדי להגיע למאה מטרים, מספיקים לו 0.95 ליטר.
צוללני עילית מוסיפים עוד טריק: דחיסת ריאות. אחרי שאיפה מלאה הם שואבים עוד אוויר לפה, ודוחפים אותו לריאות בתנועות של הלוע, שוב ושוב. סקומב ועמיתיו מדדו ב-2006 שבעה צוללנים, ומצאו שהנפח הכולל עלה בממוצע ב-1.95 ליטרים, ושכשליש מהאוויר הנוסף נכנס בזכות דחיסה של האוויר, ולא בזכות הגדלה של הריאות. לוריג ועמיתיו מדדו אצל ארבעה צוללנים לחצים של 52 עד 109 סנטימטרים של מים בתוך הריאות. אצל הצוללן שלנו, 1.95 ליטרים נוספים, בלי מעבר דם, מזיזים את הגבול ל-43.3 מטרים. אבל יש לזה מחיר: צ’ונג ועמיתיו מצאו בסריקות CT אוויר שדלף אל החלל שבין הריאות, סביב הלב, אצל חמישה מתוך שישה צוללנים שדחסו ריאות.
והגבול של שנות החמישים נשבר, אבל הוא לא היה טעות גמורה. ריאות שנדחסות מעבר ליכולת שלהן כן נפגעות, ולפגיעה הזאת קוראים מעיכת ריאות. בסקר של יו ועמיתיו מ-2024 השתתפו 132 צוללני עצירת נשימה; 103 מהם דיווחו על 140 אירועים כאלה בין 2008 ל-2023, בעומק ממוצע של 43 מטרים, והתסמינים הנפוצים היו שיעול, ליחה ועייפות. לינדהולם ועמיתיו הראו ב-2008 שאפשר להגיע לזה אפילו בבריכה: 11 צוללנים צללו לעומק שישה מטרים אחרי נשיפה מלאה, ואצל שניים מהם נמצא דם טרי מתחת למיתרי הקול. ובתחרויות, לפי אלינגר ועמיתיו, נרשמה פגיעה בריאות ב-0.38 אחוזים מתוך 38,789 הביצועים הרשמיים בשנים 2019 עד 2023.
לפני ההמחשה, נחשו: כמה דם צריך להיכנס לבית החזה של רוברט קרופט כדי שיגיע, לפי החשבון, למאה מטרים? יותר מאשר אצל הצוללן שלנו, או פחות?
הגבול שחוק בויל קבע
לפי החשבון הישן, צלילה נגמרת בעומק שבו הריאות נדחסות עד הנפח השיורי. בחרו ריאות, והוסיפו את מה שהחשבון לא ידע: דם שנכנס לבית החזה, ואוויר שנדחס לריאות לפני הצלילה.
עומק, במטרים · נפח הגז בריאות, בליטרים, בסולם לוגריתמי
חישוב, לא מדידה, לפי חוק בויל בלבד, במי ים של אילת. דופן בית החזה, הסרעפת והגמישות של הריאות אינן בחשבון. נפחי הריאות של רוברט קרופט ושל ז'אק מאיול לקוחים מסקירה של טצלף ועמיתיו מ-2021, שמצטטת את המדידות של שייפר ועמיתיו. שייפר מדד אצל קרופט 1,047 מיליליטר של דם שנכנסו לבית החזה בעומק 27.4 מטרים. השיאים: מאיורקה, 50 מטרים ב-1960; קרופט, 66 מטרים ב-1968; מאיול, 100 מטרים ב-1976 (יש מקורות שכותבים 101); מולצ'נוב, 136 מטרים ב-2023, במשקל קבוע עם סנפירים.
לקרופט מספיקים 0.47 ליטר, חצי ממה שהצוללן שלנו צריך, כי הריאות שלו גדולות פי שבעה מהנפח השיורי. לז’אק מאיול, שהריאות שלו גדולות מהנפח השיורי רק פי 3.84, נדרשים 1.22 ליטרים. כלומר, הצוללן שבא עם הריאות ה«גרועות» ביותר הגיע ראשון למאה מטרים. החשבון של שנות החמישים לא היה שגוי בפיזיקה שלו. הוא פשוט הניח שבית החזה הוא בלון, והגוף, מתברר, חכם יותר.
ציפה: ליפול בלי לחתור
למה בעשרת המטרים הראשונים המים דוחפים את הצוללן החוצה, ובעשרים מטרים הם כבר מושכים אותו למטה? התשובה היא חוק ארכימדס, יחד עם חוק בויל.
על כל גוף במים פועל כוח ציפה כלפי מעלה, השווה למשקל המים שהגוף דוחה: , כאשר הוא נפח הגוף. כוח הכובד מושך את הגוף כלפי מטה במשקל שלו. אם הגוף דוחה מים שמשקלם גדול ממשקלו, הוא צף; אם קטן, הוא שוקע. מה שקובע הוא הצפיפות הממוצעת של הגוף, מול הצפיפות של המים.
הצוללן שלנו שוקל 75 קילוגרמים, ויש לו 15 אחוזי שומן. את הצפיפות של רקמות הגוף מחשבים כבר עשרות שנים ממודל פשוט של שני רכיבים: שומן, בצפיפות של 0.90 קילוגרם לליטר, ורקמה נטולת שומן, בצפיפות של 1.10. כך מתארת את המודל ערכת המדידה של יחידת האפידמיולוגיה של המועצה הבריטית למחקר רפואי, ווואנג ועמיתיו כותבים שהצפיפות של הרקמה נטולת השומן «יציבה להפליא» אצל מבוגרים בריאים. מכאן צפיפות של 1.0645 קילוגרם לליטר, ונפח של 70.45 ליטרים. במי ים של אילת הרקמות לבדן שוקעות: הן כבדות מהמים שהן דוחות ב-2.64 קילוגרמים.
אבל בגוף יש גם גז. שישה ליטרים של אוויר בריאות דוחים 6.16 קילוגרמים של מי ים, ועל פני המים הם הופכים את הצוללן לצף. נניח שהוא לובש חליפת צלילה, שהבועות שבה מציפות אותו בעוד שלושה קילוגרמים (זו הנחה; היא תלויה בעובי ובחומר), ושהוא נושא שני קילוגרמים של עופרת. על פני המים הוא צף בכוח של 4.70 קילוגרמים.
ועכשיו הוא יורד. הרקמות והעופרת כמעט לא נדחסות, והכוח שלהן נשאר קבוע. אבל הגז בריאות ובחליפה מתכווץ לפי חוק בויל, והציפה שלו קטנה איתו. בעומק 10.6 מטרים הכוחות מתאזנים: זה עומק הציפה הניטרלית. מתחתיו הצוללן כבד מהמים, והמשקל העודף גדל עם העומק: 1.39 קילוגרמים בעשרים מטרים, 2.62 בארבעים, ו-3.62 במאה. פטרישן ועמיתיו מתארים בדיוק את זה בסקירה מ-2021: בתוך עשרים המטרים הראשונים, בערך, הצוללן מגיע לציפה ניטרלית, ומעבר לה «הוא נעשה כבד מהמים ונכנס למצב של נפילה חופשית מתמשכת».
כמה מהר הוא נופל? לא הולך ומאיץ, כמו אבן שנופלת באוויר, כי המים מתנגדים לתנועה. כוח הגרר של המים גדל עם ריבוע המהירות:
כאן הוא שטח החתך של הגוף, ו- הוא מקדם הגרר, מספר שמסכם עד כמה הצורה של הגוף «זורמת». הצוללן מאיץ עד שהגרר משתווה למשקל העודף, ומשם הוא נופל במהירות סופית קבועה:
את של גוף אדם בתנוחת גלישה אפשר לגזור ממודל זרימה ממוחשב של נובאיס ועמיתיו מ-2012: 56.01 ניוטון של גרר במהירות של 1.5 מטר לשנייה, במים בצפיפות של 998.2 קילוגרמים למטר מעוקב, נותנים מטר רבוע. עם זה הצוללן שלנו נופל במהירות של 1.00 מטר לשנייה בארבעים מטרים, ו-1.18 במאה. לשם השוואה, שייפר ועמיתיו מדדו שבצלילות בים ירד קרופט במהירות ממוצעת של 1.20 מטר לשנייה, ועלה ב-1.07.
והדרך למעלה מתחילה בדיוק הפוך. בקרקעית הצוללן כבד, והוא חייב לחתור נגד המשקל שלו עד שהגז בריאות ובחליפה מתרחב מספיק, כלומר עד עומק הציפה הניטרלית. רק בכמה המטרים האחרונים הציפה חוזרת ונושאת אותו אל פני המים. במודל שלנו הצוללן חותר במהירות של מטר לשנייה, ומפסיק לחתור בכל מקום שבו המים לבדם כבר מזיזים אותו בכיוון הנכון ב-70 סנטימטרים לשנייה לפחות. הכלל הזה הוא בחירה שלנו, לא מדידה, אבל הוא מספיק כדי לראות את הצורה.
לפני ההמחשה, נחשו: בצלילה לארבעים מטרים ובחזרה, 80 מטרים של דרך, בכמה מהם הצוללן לא צריך לחתור?
צלילה אחת, למטה ובחזרה
צלילה במשקל קבוע: בלי חבל ובלי מזחלת, רק סנפירים. הצוללן חותר במטר לשנייה, ומפסיק לחתור ברגע שהמים לבדם כבר מזיזים אותו בכיוון הנכון ב-70 סנטימטרים לשנייה לפחות. שנו את המשקולות ואת החליפה, והפעילו.
העומק לאורך הזמן
הכוח נטו, בקילוגרם-כוח: ימינה למעלה, שמאלה למטה
מודל, לא מדידה. הצוללן שוקל 75 ק״ג, יש לו 15 אחוזי שומן וריאות של 6 ליטרים, והמים הם מי ים של אילת. הצפיפות של הרקמות לפי מודל שני הרכיבים: שומן 0.90 ורקמה נטולת שומן 1.10 ק״ג לליטר. הציפה של החליפה היא הנחה, וכולה מגז שמציית לחוק בויל; ניאופרן אמיתי מאבד ציפה לאט יותר. שטח הגרר, 0.050 מטר רבוע, נגזר ממודל זרימה של גוף בתנוחת גלישה (נובאיס ועמיתיו, 2012); מדידות בשחיינים צעירים נותנות פחות מחצי מזה, ואז הנפילה מהירה יותר. הכלל שלפיו מפסיקים לחתור הוא בחירה שלנו. עם חליפה של 3 ק״ג ו-2 ק״ג משקולות: ציפה ניטרלית ב-10.6 מטרים, נפילה מ-19 מטרים, ומהירות של 1.00 מטר לשנייה ב-40 מטרים ו-1.18 ב-100. שייפר ועמיתיו מדדו אצל רוברט קרופט ירידה במהירות ממוצעת של 1.20 מטר לשנייה.
ב-27 מטרים: הנפילה מ-19 מטרים עד 40, ועוד שישה מטרים בסוף, כשהציפה נושאת אותו למעלה. הצלילה כולה נמשכת 83 שניות. בצלילה למאה מטרים הוא לא חותר ב-87 מתוך 200 המטרים, והיא נמשכת 197 שניות. ושימו לב לגרף של הכוח: בקרקעית של צלילה למאה מטרים הצוללן כבד ב-3.62 קילוגרמים, ואת כולם הוא סוחב על הגב, בחתירה, עד שהוא חוזר לעשרה מטרים. זה מספר חשוב, כי כל מטר של חתירה עולה חמצן. כמה חמצן יש לו?
כמה חמצן יש בנשימה אחת
כדי לספור את החמצן בריאות צריך קודם כלי אחד: חוק דלטון. בתערובת של גזים כל גז מפעיל לחץ משלו, הלחץ החלקי, כאילו היה שם לבד, והלחץ הכולל הוא הסכום של הלחצים החלקיים. החלק של כל גז בלחץ שווה לחלק שלו במולקולות. באוויר יבש 21 אחוזים מהמולקולות הן חמצן, ולכן בגובה פני הים הלחץ החלקי של החמצן הוא כ-160 מילימטר כספית. בריאות הוא נמוך יותר, כי שם יש גם אדי מים, 47 מילימטר כספית, וגם פחמן דו-חמצני שיוצא מהדם. לפי StatPearls, בדם העורקי, שמתאזן עם הריאות, לחץ החמצן הוא כ-100 מילימטר כספית.
כמה חמצן זה? כמות של גז פרופורציונית ללחץ כפול הנפח, חלקי הטמפרטורה. שישה ליטרים של גז בריאות, ב-37 מעלות, בלחץ חלקי של 100 מילימטר כספית, מכילים 695 מיליליטר של חמצן, כשמודדים אותם בתנאים התקניים של אפס מעלות ואטמוספירה אחת.
אבל רוב החמצן בגוף לא נמצא בריאות, אלא בדם, קשור להמוגלובין. כל גרם של המוגלובין קושר עד 1.34 מיליליטר של חמצן (StatPearls), ובכל ליטר של דם של גבר יש 140 עד 180 גרם של המוגלובין (בילט, 1990). כמה ממנו מחזיק חמצן בפועל תלוי בלחץ החמצן, לפי עקומה בצורת S: בלחץ של 100 מילימטר כספית, בדם העורקי, ההמוגלובין רווי ב-97.7 אחוזים; בלחץ של 40, בדם הורידי, ב-74.9 אחוזים. בגוף של מבוגר יש כחמישה ליטרים של דם (StatPearls), ונניח, כמו וינטי ועמיתיו, שרבע ממנו עורקי. עם 150 גרם של המוגלובין לליטר, זה 819 מיליליטר של חמצן.
ויש גם מיוגלובין, חלבון שקושר חמצן בתוך תאי השריר. לפי רייט ודייוויס, 5 גרם של מיוגלובין לכל קילוגרם של שריר הם «ערך טיפוסי ליונקים יבשתיים כמו כלב, אדם או חולדה», וכל גרם קושר 1.34 מיליליטר של חמצן. אצל גברים השרירים הם 38.4 אחוזים ממשקל הגוף (יאנסן ועמיתיו, 2000), ולכן בשרירים של הצוללן שלנו יש 193 מיליליטר.
ביחד: 1,707 מיליליטר של חמצן, 22.8 מיליליטר לכל קילוגרם, ו-41 אחוזים מהם בריאות. זה קרוב להערכה של בליקס בסקירה מ-2018: אצל אדם, «כ-25 מיליליטר חמצן לקילוגרם, ומהם כ-30 אחוזים בריאות». אצלנו הריאות מלאות עד הסוף, ולכן החלק שלהן גדול יותר.
וכמה זמן זה מחזיק? במנוחה, בישיבה, גוף שורף 3.5 מיליליטר של חמצן לכל קילוגרם בכל דקה; זו ההגדרה של יחידת המאמץ MET (ז’טה ועמיתיו, 1990). אצל הצוללן שלנו, 263 מיליליטר לדקה. אבל אי אפשר לנצל את כל החמצן: החמצן שבשרירים לא מגיע למוח, והריאות והדם לא יכולים להתרוקן לגמרי. אם איבוד ההכרה מגיע כשלחץ החמצן יורד לכ-30 מילימטר כספית (עוד נחזור לזה), יש בריאות ובדם 724 מיליליטר שאפשר לנצל: פחות משלוש דקות של מנוחה.
ובכל זאת, לפי גינס, השיא שאישר ארגון AIDA בעצירת נשימה סטטית, על פני המים, הוא 11 דקות ו-35 שניות, של סטפן מיפסוד מצרפת, מ-2009. והשיא של גינס בעצירת נשימה מתחת למים, אחרי נשימה של חמצן טהור, הוא 29 דקות ושלוש שניות, של הקרואטי ויטומיר מאריצ’יץ’, מ-2025. איך? חלק מהתשובה הוא ריאות גדולות: אצל 14 משתתפים באליפות העולם שמדדו שגטאי ועמיתיו ב-2012, הנפח החיוני, כמות האוויר שאפשר לנשוף אחרי שאיפה מלאה, היה בממוצע 7.3 ליטרים. חלק אחר הוא חיסכון, שנגיע אליו בפרק הבא. ואת החלק של החמצן הטהור נסביר בעוד שני פרקים.
ועכשיו החשבון שמסביר למה הנפילה החופשית חשובה כל כך. וינטי ועמיתיו מדדו ב-2025 אצל 22 צוללנים כמה אנרגיה עולה לשחות 50 מטרים מתחת למים, בעצירת נשימה: 1.25 ליטרים של חמצן, או כמות שקולה של אנרגיה, עם מונופין, ו-1.69 עם שני סנפירים. חלק מהאנרגיה הזאת לא בא מחמצן בכלל, אלא מפירוק של סוכר בלי חמצן, שמייצר חומצה לקטית: בשחייה של 50 מטרים זה היה 10 אחוזים מהאנרגיה, וב-100 מטרים 21. אם מכפילים פי ארבעה, כדי לשחות 200 מטרים, התוצאה חדה: צלילה של מאה מטרים שבה חותרים את כל הדרך הייתה עולה 5.0 עד 6.8 ליטרים, פי שלושה עד ארבעה מכל החמצן שיש בגוף של הצוללן שלנו. הנפילה החופשית, שבה לא חותרים, היא לא מותרות. היא חלק ממה שהופך צלילה כזאת לאפשרית.
והחיות שעושות את זה כל יום? לפי טיפט ופונגאניס, לפיל הים הצפוני יש 94 מיליליטר של חמצן לכל קילוגרם, פי ארבעה מאדם, ורק 4 אחוזים ממנו בריאות: 68 אחוזים בדם ו-28 בשרירים. בשרירים של כלב הים של ודל יש 54 גרם של מיוגלובין לקילוגרם, יותר מפי עשרה מאדם (רייט ודייוויס), ולפי בליקס ההמטוקריט של כלבי ים, החלק שכדוריות הדם האדומות תופסות מנפח הדם, מגיע לכ-60 אחוזים, לעומת 45 אצל אדם. ובליקס מוסיף פרט מפתיע: כלבי ים לא צוללים עם ריאות מלאות. הם נושפים לפני הצלילה, «כדי להקטין את הציפה ולהימנע ממחלת הצוללים». למה, נבין בפרק על החנקן.
לאדם יש עוד מאגר קטן, מפתיע: הטחול. הטחול אוגר דם עשיר בכדוריות אדומות, וכשעוצרים נשימה הוא מתכווץ ושולח אותן למחזור הדם. שגטאי ועמיתיו ביקשו ב-2001 מ-20 מתנדבים, עשרה מהם בלי טחול, לעצור את הנשימה חמש פעמים עם הפנים במים של 10 מעלות, בהפרש של שתי דקות. אצל מי שהיה לו טחול, ההמטוקריט עלה ב-6.4 אחוזים וההמוגלובין ב-3.3, ונקודת השבירה של עצירת הנשימה נדחתה ב-30.5 אחוזים, 17 שניות. אצל מי שלא היה לו טחול, שום דבר מזה לא קרה. בקוביץ’ ועמיתיו מדדו ב-2003 ירידה של כ-20 אחוזים בנפח הטחול, רובה כבר בעצירה הראשונה, והטחול עוד לא חזר לגודלו שעה אחרי; שגטאי ועמיתיו ראו ב-2005 אותו חוזר לגודלו תוך שמונה עד תשע דקות. המחקרים לא מסכימים.
והטחול הוא גם הדוגמה הראשונה לאבולוציה של צלילה אצל בני אדם. הבאג’או, «נוודי הים» של דרום-מזרח אסיה, מתפרנסים מצלילה על נשימה אחת. אילרדו ועמיתיו מצאו ב-2018 ש«ברירה טבעית בגרסאות של הגן PDE10A הגדילה את הטחול של הבאג’או, ונתנה להם מאגר גדול יותר של כדוריות דם אדומות עשירות בחמצן». אצל החאניו, הצוללות מהאי ג’ג’ו בדרום קוריאה, אגילר-גומס ועמיתיו לא מצאו ב-2025 הבדל בגודל הטחול בינן לבין נשים אחרות מג’ג’ו, אם כי לשתי הקבוצות מג’ג’ו היה טחול גדול יותר מאשר לנשים מסיאול.
לפני ההמחשה, נחשו: לפיל הים יש פי ארבעה חמצן לקילוגרם מאשר לאדם. איפה רובו: בריאות, בדם או בשרירים?
כמה חמצן יש בגוף, ומה עולה לשחות
מיליליטרים של חמצן לכל קילוגרם של משקל גוף. למעלה, המאגרים: בריאות, בדם ובשרירים. למטה, כמה אנרגיה עולה לשחות מתחת למים, באותן יחידות.
גם אם הצוללן מנצל את כל החמצן שבגופו, 200 מטרים של שחייה עולים פי שלושה עד ארבעה מזה. צלילה של 100 מטרים, שבה שוחים את כל הדרך למטה ובחזרה, לא אפשרית על חמצן בלבד.
המאגרים של הצוללן שלנו מחושבים: ריאות של 6 ליטרים, 5 ליטרים של דם עם 150 גרם המוגלובין לליטר, רבע ממנו עורקי ושלושה רבעים ורידי, ושרירים שהם 38.4 אחוזים ממשקל הגוף, עם 5 גרם מיוגלובין לקילוגרם. בליקס (2018) מעריך את המאגר של אדם בכ-25 מיליליטר לק״ג, כשכ-30 אחוזים ממנו בריאות. פיל הים הצפוני: 94 מיליליטר לק״ג (טיפט ופונגאניס, 2019). ההוצאה: שחייה של 50 מטרים מתחת למים עלתה 1.25 ליטרים של חמצן, או ערך שקול באנרגיה, עם מונופין, ו-1.69 עם שני סנפירים (וינטי ועמיתיו, 2025), מחולק ב-76 ק״ג, המשקל הממוצע של המשתתפים. את 200 המטרים לא מדד איש: אלה פי ארבעה.
בדם, ובשרירים. לפיל הים כמעט אין חמצן בריאות, והוא לא צריך אותו שם: דם ושרירים לא נדחסים. ואצל אדם, שרוב החמצן שלו בריאות ובדם, כל ליטר של ריאות, ובמיוחד כל ליטר של ריאות דחוסות, הוא גם חמצן וגם בעיה.
הגוף עובר למצב צלילה
במנוחה הגוף שורף 263 מיליליטר של חמצן בדקה. אבל כשהפנים של יונק נכנסות למים והנשימה נעצרת, הגוף משנה את ההתנהגות שלו. לשינוי הזה קוראים תגובת הצלילה, ויש לה שלושה חלקים עיקריים: הלב מאט, כלי הדם בגפיים ובעור מתכווצים, והטחול, כמו שראינו, מתכווץ. כשהלב מאט וכלי הדם שבפריפריה נסגרים, הדם שעדיין זורם מגיע בעיקר ללב ולמוח. השרירים נשארים עם מה שיש בהם, והחמצן שבריאות ובדם נחסך לאיברים שלא יכולים בלעדיו.
מה מפעיל את התגובה? שני דברים: עצירת הנשימה, ומים קרים על הפנים. חורנה ועמיתיו הראו ב-1980 שמספיק להניח קומפרסים קרים על הפנים כדי לקבל האטה של הלב שדומה לזו של צלילה מדומה, ושהענף העיני של העצב התלת-ראשי, העצב שמעביר תחושה מהמצח ומסביב לעיניים, הוא הרגיש מכולם לגירוי הזה.
כמה הלב מאט? זה תלוי מאוד בתנאים. אנדרסון ושגטאי מדדו ב-1998 עשרים ואחד אנשים שעצרו נשימה במנוחה, כ-126 שניות בכל פעם. באוויר, הלב האט ב-7.8 אחוזים וזרימת הדם בעור ירדה ב-37.7 אחוזים; עם הפנים במים של 10 מעלות, ב-13.6 וב-55.9. והרוויה של החמצן בדם ירדה פחות: 1.4 אחוזים עם המים, לעומת 2.7 באוויר. במאמץ ההבדלים גדולים יותר. אצל שמונה צוללנים מאומנים, שרכבו על אופני כושר בהספק של 100 ואט ועצרו נשימה ל-30 שניות, הלב האט ב-21 אחוזים באוויר, וב-33 עם הפנים במים (אנדרסון ועמיתיו, 2002).
לפני ההמחשה, נחשו: מה מאט את הלב יותר, עצירת הנשימה באוויר או עצירת הנשימה עם הפנים במים קרים? ומה קורה לרוויה של החמצן?
כמה הגוף מאט, ובאילו תנאים
מדידות, לא מודל. בכל זוג: אותה עצירת נשימה, פעם באוויר ופעם עם הפנים במים של 10 מעלות. בחרו מה להשוות.
מדידות של אחרים, ממוצעים של כל קבוצה. במנוחה: 21 אנשים שעצרו את הנשימה 126 שניות בממוצע (אנדרסון ושגטאי, 1998). במאמץ: 8 צוללני עצירת נשימה מאומנים, שרכבו על אופני כושר בהספק של 100 ואט ועצרו את הנשימה 30 שניות (אנדרסון ועמיתיו, 2002). זרימת הדם בעור נמדדה רק במנוחה. משכי העצירה שונים, ולכן כדאי להשוות בתוך זוג, ולא בין הזוגות. את שני המאמרים קראתי בתקציר בלבד.
שני דברים בולטים. הראשון: המים הקרים מעמיקים את ההאטה בכל התנאים. והשני, החשוב יותר: כשההאטה עמוקה יותר, החמצן בדם יורד לאט יותר. לינדהולם ועמיתיו מצאו את זה ב-1999 גם באותם אנשים עצמם: תשעה גברים, בזמן מאמץ, עצרו נשימה, או נשמו שוב ושוב את אותו אוויר. בעצירת הנשימה הלב האט ב-44 פעימות בדקה, והרוויה ירדה בקצב של 1.1 אחוזים לשנייה; בנשימה החוזרת הלב האיץ בשלוש פעימות, והרוויה ירדה בקצב כפול, 2.2 לשנייה. ומי שהלב שלו האט יותר, איבד חמצן לאט יותר. אנדרסון ועמיתיו מדדו ב-2004 גם כמה חמצן נלקח מהריאות. בזמן מאמץ, עצירת נשימה באוויר הורידה את ספיגת החמצן מהריאות ב-22 אחוזים, ועם הפנים במים קרים ב-25. זה המספר שהמודלים שלנו משתמשים בו: תגובת הצלילה חוסכת כרבע.
והאימון משנה את התגובה. לפי סקירה של אליה ועמיתיו מ-2021, אצל צוללנים מנוסים הלב מאט מוקדם יותר, אחרי 10 עד 20 שניות, ועמוק יותר, אל מתחת לכ-35 פעימות בדקה, לעומת 50 עד 70 שניות וכ-50 פעימות אצל מי שלא צולל. מולדר ועמיתיו מדדו ב-2021 ארבעה צוללני עילית בים, בעזרת מד רוויה שהוצמד לרקות: הקצב הנמוך ביותר בכל צלילה היה בממוצע 42 פעימות בדקה, והנמוך מכולם 28. ובצלילות העמוקות הם ראו משהו יפה: אחרי הירידה הראשונה בקצב הלב הגיעה ירידה שנייה, בדיוק בשלב של הנפילה החופשית, כשהצוללן מפסיק לחתור.
וזה לא רק ספורט. בקוריאה וביפן אוספים צוללות וצוללים מזון מקרקעית הים על נשימה אחת. הונג ועמיתיו הצמידו ב-1989 וב-1990 רשמים אלקטרוניים לצוללות קוריאניות: הן צללו בממוצע לעומק 3.7 מטרים, ל-29 שניות, 113 עד 138 פעמים ביום, ובילו במים 170 עד 200 דקות ביום, רק 52 עד 63 מהן מתחת לפני המים. בקיץ המים היו ב-24 מעלות, ובחורף ב-10. אצל החאניו מג’ג’ו, אגילר-גומס ועמיתיו מדדו ב-2025 האטה של 18.8 פעימות בדקה בצלילה מדומה, לעומת 12.6 אצל נשים אחרות מג’ג’ו, והכותבים מייחסים את ההבדל לאימון.
מה גורם לרצות לנשום
נסו לעצור נשימה עכשיו, בכיסא. אחרי זמן מה מתחילה תחושה לא נעימה, שהולכת ומתחזקת, ובסוף הנשימה פורצת. מה בדיוק מפעיל אותה? המחשבה הראשונה היא שנגמר החמצן. מתברר שבעיקר לא.
פארקס סקר ב-2006, בכתב העת Experimental Physiology, את מה שידוע על עצירת נשימה ועל נקודת השבירה שלה, והמסקנה שלו מפתיעה. אנשים רגילים, הוא כותב, «לא מסוגלים, כך נראה, לעצור את הנשימה עד איבוד הכרה»: מנגנון לא רצוני חזק גובר על הרצון, וגורם לנשימה. ומה שמפעיל אותו לא מוסבר רק בכיווץ של הריאות, רק בלחצים של הגזים בדם, או רק בחיישנים הכימיים שבעורקי התרדמה. יש כמה עובדות ידועות: עצירת נשימה נמשכת יותר אחרי שאיפה גדולה, אחרי נשימה של חמצן, ואחרי שהורידו את הפחמן הדו-חמצני, ופחות כשקצב חילוף החומרים עולה. ויש שתיים פחות ידועות: הקצב של מרכז הנשימה במוח ממשיך לפעום כל זמן העצירה, ואנחנו רק מדכאים את הביטוי שלו; ושיתוק של העצבים של הסרעפת מאריך את העצירה. «כרגע», מסכם פארקס, «אין הסבר פשוט לנקודת השבירה».
אבל לגורם אחד יש תפקיד מרכזי, ואפשר לראות אותו במספרים: הפחמן הדו-חמצני. הגוף מייצר אותו כל הזמן, וכשלא נושמים הוא מצטבר בדם. לפי StatPearls, הדחף הראשוני לנשום מופיע בדרך כלל כשהלחץ החלקי שלו בדם העורקי מגיע ל-45 עד 60 מילימטר כספית, כשהערך הרגיל הוא 35 עד 45.
אצל צוללנים מאומנים אפשר לחלק עצירת נשימה לשני שלבים. קרוס ועמיתיו מדדו ב-2013 עשרה צוללנים שעצרו נשימה עד הסוף, מחוץ למים. בשלב הראשון, «השלב הקל», שרירי הנשימה שקטים לגמרי, והוא נמשך בממוצע 96 שניות. השלב השני, «שלב המאבק», מתחיל כשמופיעות התכווצויות לא רצוניות של שרירי הנשימה, שמתחזקות ונעשות תכופות יותר, מ-20 התכווצויות בדקה בתחילת השלב ל-34 בסופו. הוא נמשך עוד 91 שניות: כמעט חצי מכל העצירה. וההתכווצויות האלה, כך נראה, לא רק מציקות. דוּייץ’ ועמיתיו מצאו ב-2009 שהן עוזרות לשמור על נפח הדם במוח בשלב המאבק.
וכאן מגיעה המלכודת. אם החמצן הוא מה שנגמר, והפחמן הדו-חמצני הוא מה שמפעיל את האזעקה, מה קורה כשמורידים את הפחמן הדו-חמצני לפני הצלילה? בדיוק את זה עושה היפרוונטילציה, סדרה של נשימות מהירות ועמוקות. לינדהולם ולונדגרן מדדו ב-2006 תשעה מתחרים בעצירת נשימה סטטית: אחרי ההיפרוונטילציה שלהם, לחץ הפחמן הדו-חמצני באוויר הנשוף היה 18.9 מילימטר כספית, חצי מהרגיל. הם עצרו נשימה 284 שניות בממוצע, ובסוף לחץ הפחמן הדו-חמצני הגיע רק ל-38.3, ערך רגיל, בזמן שלחץ החמצן ירד מ-131.7 ל-26.9. אצל שניים מהם הופיע איבוד שליטה מוטורית, בלחצי חמצן של 19.6 ו-21.0. המסקנה של הכותבים היא שהספורטאים האלה מחליטים מתי להפסיק בעיקר לפי התחושה של המחסור בחמצן. ואצל מי שלא מאומן לזה? לפי StatPearls, אחרי היפרוונטילציה העלייה בפחמן הדו-חמצני «עלולה לא להפעיל את הדחף לנשום לפני שמתרחש איבוד הכרה מחוסר חמצן».
אלברט קרייג סיכם ב-1976 58 מקרים של איבוד הכרה בשחייה ובצלילה מתחת למים, מהסוג הזה. כמעט כולם, 56, היו גברים, קבוצת הגיל הנפוצה ביותר הייתה בני 16 עד 20, וכולם היו ידועים כשחיינים או כצוללנים טובים. כ-80 אחוזים מהמקרים קרו בבריכות עם מציל. 23 מהם מתו. ולפי ניסויי עצירת נשימה שערך, הזמן שבין איבוד ההכרה למוות עשוי להיות קצר משתי דקות וחצי.
לפני ההמחשה, נחשו: שוכבים על המים, אחרי היפרוונטילציה. מה יגיע קודם, הדחף לנשום או איבוד ההכרה? ומה אם שוחים?
שני שעונים: החמצן והפחמן הדו-חמצני
עצירת נשימה על פני המים. למעלה: לחץ החמצן בריאות, שיורד. למטה: לחץ הפחמן הדו-חמצני, שעולה. כשהחמצן מגיע לרצועה הכתומה, מאבדים הכרה. כשהפחמן הדו-חמצני מגיע לרצועה המקווקוות, מתחיל הדחף לנשום. מי מגיע ראשון?
לחץ החמצן בריאות, מילימטר כספית
לחץ הפחמן הדו-חמצני, מילימטר כספית
זמן, בדקות
מודל, לא מדידה. בשנייה הראשונה האוויר שבריאות מתערבב במודל עם הדם הורידי, ולכן קו החמצן מתחיל ב-80 ולא ב-100, ואחרי היפרוונטילציה ב-109 ולא ב-131.7. החמצן בריאות ובדם מטופל כמאגר אחד, והגוף שורף ממנו 3.5 מיליליטר לק״ג לדקה במנוחה, רבע פחות עם תגובת הצלילה, ופי ארבעה בשחייה, לפי מה שמדדו וינטי ועמיתיו. בשחייה הקצב נמדד כבר בזמן עצירת נשימה, ולכן הכפתור של תגובת הצלילה כבוי שם. הפחמן הדו-חמצני עולה בקצב שמדדו לינדהולם ולונדגרן בעצירת נשימה סטטית, פי ארבעה בשחייה. הרצועות לפי סקירה של StatPearls. שתי בדיקות מול מדידות: אחרי היפרוונטילציה, עם תגובת הצלילה, המודל מגיע ל-26.9 מילימטר כספית אחרי 326 שניות, והצוללנים של לינדהולם ולונדגרן הגיעו לשם אחרי 284. בשחייה, עם ריאות של 7.3 ליטרים, המודל נותן 39 אחרי 47 שניות, וּוינטי מדד 52, עם סטיית תקן של 10.
בנשימה רגילה, במנוחה, הדחף לנשום מגיע אחרי 73 שניות, הרבה לפני שהחמצן יורד ל-30 מילימטר כספית, אחרי 171. זו מערכת בטיחות טובה. אחרי היפרוונטילציה התמונה מתהפכת: החמצן מגיע ל-30 אחרי 224 שניות, והפחמן הדו-חמצני מגיע ל-45 רק אחרי 382. בשחייה מתחת למים, שבה הגוף שורף פי ארבעה, הכל קורה מהר יותר: בנשימה רגילה הדחף מקדים את איבוד ההכרה ב-25 שניות, ואחרי היפרוונטילציה איבוד ההכרה מקדים את הדחף ב-39. אין אזעקה. יש רק חושך.
ושימו לב מה ההיפרוונטילציה עשתה לחמצן: כמעט כלום. היא העלתה את לחץ החמצן בריאות מ-100 ל-131.7, אבל ההמוגלובין כבר היה רווי כמעט לגמרי, ולכן במנוחה היא הוסיפה רק 53 שניות עד לרצועת איבוד ההכרה. את השעון של הדחף לנשום היא הזיזה ב-309 שניות.
ועכשיו אפשר להבין את השיא של 29 הדקות. לפי לרקין ופיפלס, מאריצ’יץ’ נשם חמצן טהור עשר דקות לפני העצירה. לפי חוק דלטון, כשבריאות יש רק חמצן, אדי מים ופחמן דו-חמצני, לחץ החמצן בהן יכול להגיע ל-760 פחות 47 פחות 40, כלומר ל-673 מילימטר כספית, במקום 100. ששת הליטרים של הצוללן שלנו יחזיקו אז 4,679 מיליליטר של חמצן, פי 6.7. במודל שלנו, שלא מחשב במקרה הזה את הפחמן הדו-חמצני, זה מספיק ל-24.9 דקות של מנוחה עם תגובת הצלילה. ומה קובע את הסוף של עצירה כזאת, המודל כבר לא יודע לומר.
המטרים האחרונים
עכשיו יש לנו את כל החלקים כדי להבין את הדבר המוזר ביותר בצלילה חופשית: למה החלק המסוכן הוא הסוף.
לפי חוק דלטון, לחץ החמצן בריאות הוא החלק של החמצן בגז, כפול הלחץ של הגז היבש:
כשהצוללן יורד, המים דוחסים את הריאות, והלחץ עולה. החלק של החמצן בגז דווקא יורד, כי הגוף שורף אותו, אבל הלחץ עולה מהר יותר, ולכן לחץ החמצן בריאות, וגם בדם שמתאזן איתן, עולה בדרך למטה. הגוף לא מקבל מזה אפילו מולקולה אחת נוספת של חמצן; הוא רק מרגיש את אותו חמצן בלחץ גבוה יותר.
בדרך למעלה הכל מתהפך. החמצן שנשאר, שהוא עכשיו פחות, מתפזר בנפח שהולך וגדל, והלחץ שלו יורד. והירידה החדה ביותר, כמו כל דבר בחוק בויל, מתרחשת בעשרת המטרים האחרונים: לחץ הגז היבש בריאות יורד שם ל-48.5 אחוזים, ולחץ החמצן יורד איתו, אם הדם לא מפצה. צוללן שהיה בסדר בעשרה מטרים יכול להגיע לפני המים עם כחצי מלחץ החמצן שהיה לו שם.
האם זה נמדד? כן. סקוט ועמיתיו חיברו ב-2021 צנתר לעורק ביד של צוללן עילית, וצוללן נוסף, עם ציוד צלילה, לקח ממנו דגימות דם בעומק 60 מטרים. בשתי צלילות, של כשתי דקות כל אחת, לחץ החמצן בדם העורקי עלה מ-15.8 קילופסקל לפני הצלילה, אחרי היפרוונטילציה ודחיסת ריאות, ל-42.8 ו-33.3 קילופסקל בעומק, ו«ירד בחדות» ל-8.2 ו-8.6 בפני המים, לפני הנשימה הראשונה. במילימטרים של כספית: מ-118.5, ל-321 ול-250, ול-61.5 ול-64.5. בוסקו ועמיתיו מדדו ב-2018 שישה צוללנים שירדו על מזחלת ל-40 מטרים. אצל ארבעה מהם לחץ החמצן בקרקעית עלה, כמו שהפיזיקה צופה, עד 290 מילימטר כספית, אבל אצל שניים הוא דווקא ירד, ל-75 ול-61. הכותבים משערים שהריאות, שנדחסו לחמישית מהנפח שלהן, קרסו בחלקן, ושדם זרם דרך אזורים שאין בהם אוויר. ובמחקר נוסף, מ-2026, מצאו סקוט ועמיתיו אצל שלושה צוללנים שלחץ החמצן בקרקעית היה הגבוה ביותר דווקא בצלילות ל-40 מטרים, 29.3 קילופסקל, ולא בצלילות ל-60 או ל-80.
מולדר ועמיתיו, עם מד הרוויה על הרקות, ראו את אותה תמונה מזווית אחרת. בצלילות לעומק של 73 מטרים בממוצע, הרוויה הנמוכה ביותר נמדדה «ליד סוף הצלילות העמוקות או מיד אחריו», והייתה בממוצע 55 אחוזים, והנמוכה מכולן 44. הירידה הקיצונית אל מתחת ל-50 אחוזים ליד פני המים, הם כותבים, «עשויה לנבוע מהלחץ ההולך ופוחת». ומקנייט ועמיתיו, שמדדו באותה שנה צוללני עילית בצלילות עד 107 מטרים, ראו אצל אחד מהם רוויה עורקית של 25 אחוזים.
לפני ההמחשה, נחשו: באיזה עומק לחץ החמצן בדם של הצוללן נמוך ביותר?
החמצן בדרך למטה, ובדרך למעלה
לחץ החמצן בדם העורקי לאורך צלילה אחת. בירידה הוא עולה, כי המים דוחסים את הגז שבריאות. בעלייה הוא יורד, וכשהריאות פתוחות, הנקודה הנמוכה ביותר מגיעה בסוף. הנקודות הלבנות הן מדידות אמיתיות, בצוללני עילית.
לחץ החמצן (סולם לוגריתמי) מול העומק
לחץ החמצן (סולם לוגריתמי) מול הזמן
מודל, לא מדידה, אלא בנקודות. הצוללן מתחיל בלחץ חמצן של 100 מילימטר כספית, אחרי נשימה רגילה, או של 118.5, מה שסקוט ועמיתיו מדדו אצל הצוללן שלהם אחרי היפרוונטילציה ודחיסת ריאות. את קצב שריפת החמצן בחתירה בצלילה עמוקה לא מדד איש: הכפתורים נותנים את הקצב שנמדד בשחייה אופקית מתחת למים (וינטי ועמיתיו, 2025), או חצי ממנו. במצב "הריאות קורסות" חילוף הגזים נעצר כשהגז בריאות קטן מהנפח השיורי. הריאות של העילית: 9.1 ליטרים של רוברט קרופט, ועוד 1.95 ליטרים של דחיסה. המדידות: בוסקו ועמיתיו, שישה צוללנים שירדו על מזחלת ל-40 מטרים, בין 61 ל-290 מילימטר כספית בקרקעית; סקוט ועמיתיו, צוללן אחד בשתי צלילות ל-60 מטרים, 250 ו-321 בקרקעית, ו-61.5 ו-64.5 בפני המים, לפני הנשימה הראשונה. עם ריאות עילית פתוחות, המודל שם את הקרקעית גבוה יותר משתי המדידות של סקוט. ועוד פרט של המודל: בשנייה הראשונה האוויר שבריאות מתערבב עם הדם הורידי, ולכן הקו מתחיל נמוך מהערך שלפני הצלילה, למשל ב-106 ולא ב-118.5 עם ריאות עילית.
כשהריאות פתוחות, הנקודה הנמוכה ביותר נמצאת תמיד בפני המים. במצב של ריאות קורסות, בצלילות עמוקות, היא יכולה להגיע עוד בעומק, במקום שבו הריאות נפתחות מחדש. עם ריאות עילית, כשמתחילים כמו הצוללן של סקוט, בצלילה ל-60 מטרים, המודל נותן בקרקעית 529 מילימטר כספית, וביציאה מהמים 32, בקצב השריפה של שחייה אופקית; בחצי מהקצב, 598 ו-58. המדידות של סקוט נמצאות ליד הקצב הנמוך ביציאה, 61.5 ו-64.5, ומתחת לשני הקצבים בקרקעית, 250 ו-321. המודל לא מדויק, וזה צפוי: הוא לא יודע כמה גדולות הריאות של הצוללן של סקוט, כמה חמצן באמת נשרף בצלילה עמוקה, ועד כמה הריאות מחליפות גזים בעומק. אבל הצורה, לולאה שעולה בדרך למטה ויורדת בדרך למעלה, ומסתיימת בנקודה הנמוכה ביותר, היא לא עניין של מספרים. היא חוק בויל וחוק דלטון.
וזה מה שרואים גם בתחרויות. לינדהולם אסף ב-2007 את התוצאות של תחרויות בינלאומיות גדולות מ-1998 ומ-2001 עד 2004: 11 אחוזים מהצלילות במשקל קבוע נפסלו בגלל סימנים של מחסור בחמצן. בשנים 2002 עד 2004, מתוך 344 צלילות כאלה, 6.1 אחוזים הסתיימו באיבוד הכרה, ועוד 6.1 באיבוד שליטה מוטורית. אלינגר ועמיתיו ספרו 38,789 ביצועים רשמיים ב-988 תחרויות בין 2019 ל-2023, ואיבוד הכרה ב-3.31 אחוזים מהם, בעיקר במקצועות בלי סנפירים. ובכל זאת, לפי לינדהולם, מהתחרויות שבדק לא דווח על מוות או על נזק קבוע. איבוד הכרה במים הופך למוות כשאין מי שיוציא את הצוללן מהם, ולפי קרייג, ייתכן שיש לזה פחות משתי דקות וחצי.
זה הכלל שעליו עומדת כל צלילה חופשית: אחד צולל, ואחד משגיח מתוך המים, קרוב מספיק כדי להגיע אליו בתוך שניות, ובמיוחד במטרים האחרונים וברגעים שאחרי היציאה מהמים, כשהחמצן בשפל.
חנקן
עד עכשיו התעלמנו מ-79 אחוזים מהאוויר: החנקן, ועוד קצת ארגון. הגוף לא משתמש בו, ובאופן רגיל הוא רק נכנס ויוצא. אבל גם הוא מציית לחוק דלטון, ובעומק הלחץ החלקי שלו בריאות עולה: 563 מילימטר כספית בפני המים, 2,950 בארבעים מטרים, ו-6,531 במאה.
וכמה חנקן מתמוסס בדם וברקמות? על זה עונה חוק הנרי: כמות הגז שמתמוססת בנוזל, בשיווי משקל, פרופורציונית ללחץ החלקי של הגז מעל הנוזל. זה החוק של בקבוק סודה: כשהבקבוק סגור, בלחץ, הרבה פחמן דו-חמצני מומס במשקה. כשפותחים, הלחץ יורד, והגז שכבר לא יכול להישאר מומס יוצא בבועות. בגוף, בועות של חנקן שנוצרות כשהלחץ יורד מהר אחרי שהרקמות נטענו בחנקן הן מחלת הדקומפרסיה, מחלת הצוללים.
צוללי מכלים נושמים אוויר דחוס כל זמן שהם בעומק, והרקמות שלהם מקבלות עוד ועוד חנקן. צוללן על נשימה אחת לוקח איתו רק את החנקן שבריאות: אצל הצוללן שלנו, 3,916 מיליליטר, ולא יותר. ולכן צלילה אחת, קצרה, טוענת את הגוף בהרבה פחות חנקן.
וכמה זה מסוכן? פיץ-קלארק אסף ב-2009 את כל הצלילות המתועדות על נשימה אחת לעומק של מאה מטרים ויותר, מ-1976 עד 2006: 192 צלילות של 24 צוללנים, והעמוקה שבהן ל-209 מטרים. היו בהן שני מקרי מוות בטביעה, ושני מקרים של מחלת הדקומפרסיה. לפי המודל שבנה, הסיכון זניח עד כמאה מטרים, ומעבר לזה עולה, עד שהוא מתייצב על 5 עד 7 אחוזים מעבר ל-230 מטרים, שם הריאות קורסות לגמרי ומפסיקות להעביר חנקן. הרברט ניטש מאוסטריה צלל ב-2012 ל-253 מטרים, ולפי גינס, «אחרי הצלילה הוא סבל ממחלת דקומפרסיה קשה».
ויש לחנקן השפעה נוספת, בעומק עצמו: שכרון מעמקים. לפי פטרישן ועמיתיו, שכרון מעמקים «אינו נדיר» בצלילות על נשימה אחת מעבר לכ-70 עד 90 מטרים, ואיבוד זיכרון זמני הוא תסמין נפוץ שלו.
אבל הסכנה הגדולה יותר לא נמצאת בצלילה אחת עמוקה, אלא בהרבה צלילות, שוב ושוב. המקרה הקלאסי, לפי DAN, דווח ב-1965 בידי פאולב, שחלה בעצמו: אחרי שמונה דקות בתא לחץ, כמלווה, בעומק של 66 רגל, 20 מטרים, הוא צלל על נשימה אחת לאותו עומק, שוב ושוב, במשך חמש שעות, וסבל מבחילה, מסחרחורת, מכאבים בירכיים ובברכיים, מחולשה, מעקצוצים ומטשטוש ראייה. אצל צוללי הפנינים בפולינזיה תיאר קרוס בשנות השישים תסמונת שנקראה «טאראוואנה», ולפי קושי ועמיתיו היא כנראה מחלת דקומפרסיה. וביפן, לפי אותה סקירה, סקר רחב מצא ש-12 מתוך 173 צוללי אמה, 6.9 אחוזים, חוו אירועים דמויי שבץ, «במהלך משמרות של כמה שעות של צלילות חוזרות לעומק של יותר מ-20 מטרים, או כמה דקות אחריהן».
למה צלילות חוזרות מסוכנות יותר? כי רקמות שונות נטענות בחנקן בקצב שונה. הדם ורקמות שהדם זורם בהן מהר מתאזנים מהר; רקמות אחרות, לאט מאוד. צלילה אחת, קצרה, מספיקה כדי לטעון את הרקמות המהירות, והן גם מתרוקנות מהר. שעות של צלילות, עם הפסקות קצרות, טוענות גם את האיטיות, והן לא מספיקות להתרוקן בין צלילה לצלילה.
לפני ההמחשה, נחשו: מה טוען יותר חנקן ברקמות האיטיות, צלילה אחת למאה מטרים או חמש שעות של צלילות לעשרים?
חנקן שנכנס לרקמות, ויוצא מהן
ארבע רקמות דמיוניות, מהירה ואיטית. כל אחת מתקרבת ללחץ החנקן שבריאות בקצב משלה: הזמן שלוקח לה לעבור חצי מהדרך הוא מחצית הזמן שלה. בחרו יום צלילה.
עומק
לחץ החנקן ברקמות, מילימטר כספית
זמן, בשעות
מודל, לא מדידה, ולא מודל לתכנון צלילות. מחציות הזמן של הרקמות נבחרו להמחשה, בדרך שהציעו בויקוט, דמנט והולדיין ב-1908. הריאות אף פעם לא נגמרות מחנקן ולא קורסות, ולכן צלילה עמוקה טוענת כאן יותר ממה שהיא טוענת באמת. אין קו של מחלת דקומפרסיה: אם נוצרות בועות, זה תלוי ברקמה ובעוד דברים שהמודל לא יודע. היום של צוללת האמה לפי הממוצעים של הונג ועמיתיו: 3.7 מטרים, 29 שניות, 125 צלילות בהפרש של כדקה. היום של 20 המטרים הוא מהסוג שתיאר פולב, לפי DAN, ושתיארו קושי ועמיתיו אצל צוללות אמה: שעות של צלילות חוזרות לעומק של 20 מטרים ויותר. אורך הצלילות וההפסקות, דקה כל אחת, הוא הנחה.
הצלילה למאה מטרים מקפיצה את הרקמה המהירה ל-1,672 מילימטר כספית, אבל הרקמה האיטית, עם מחצית זמן של 320 דקות, עולה רק ל-584, ושעה אחרי הצלילה כמעט הכל חזר. חמש שעות של צלילות לעשרים מטרים מעלות את הרקמה של 80 הדקות ל-933, הרבה מעל לחץ האוויר, ושעה אחרי הסוף היא עוד ב-781. והיום של הצוללת הקוריאנית, 125 צלילות לעומק 3.7 מטרים, לא מביא אף רקמה אל לחץ האוויר: עומק כזה פשוט לא מספיק.
ועכשיו אפשר להבין את כלבי הים שנושפים לפני הצלילה. אם אין אוויר בריאות, אין חנקן שייכנס לדם. לפי קוימן ופונגאניס, אצל יונקים ימיים הריאות קורסות כבר בעומק רדוד, «וזה מגביל את ספיגת החנקן». אצל אדם זה לא קורה מוקדם. לפי טצלף ועמיתיו, דווקא העובדה שהריאות שלנו לא קורסות מוקדם בירידה מאפשרת לחילוף הגזים להימשך לעומק רב, ו«דוחפת» חנקן אל הרקמות.
חייה של צלילה אחת
לפני שמסכמים, בואו נלווה את הצוללן שלנו בצלילה אחת לארבעים מטרים, עם חליפה ששווה שלושה קילוגרמים של ציפה ושני קילוגרמים של עופרת, ונשתמש בכל מה שבנינו. כל המספרים יוצאים מהמודל, חוץ מהדופק שבהמחשה, שמצויר לפי מדידות ואינו חלק מהמודל.
לפני ההמחשה, נחשו: באיזה רגע בצלילה הריאות של הצוללן קטנות ביותר, ובאיזה רגע לחץ החמצן בדם שלו נמוך ביותר? זה אותו רגע?
צלילה אחת, מבפנים
אותה צלילה, והפעם מתוך הגוף: הריאות מתכווצות, דם נכנס לבית החזה, הלב מאט, והחמצן בדם עולה ויורד. הצוללן, החליפה, המשקולות והנשימה הרגילה לפני הצלילה הם כמו בטקסט. הדופק, כלי הדם והטחול מצוירים לפי מדידות, להמחשה, ואינם חלק מהמודל.
הגוף, בחתך. עכשיו: על פני המים
העומק, ומתחתיו לחץ החמצן בדם העורקי בסולם לוגריתמי, לאורך הזמן בשניות
מודל, לא מדידה, והדופק, כלי הדם והטחול הם ציור. הצוללן כמו בטקסט: 75 ק״ג, ריאות של 6 ליטרים ונפח שיורי של 1.5, חליפה שמציפה 3 ק״ג ו-2 ק״ג משקולות, במי ים של אילת. הגז בריאות לפי חוק בויל, ומתחת לנפח השיורי הדם ממלא בדיוק את מה שהגז מפנה: זה כלל של המודל, לא מדידה. לחץ החמצן מהמודל של הפרק על המטרים האחרונים, עם ריאות פתוחות, ולחץ החנקן לפי חוק דלטון. הדופק מתחיל ב-79 לדקה, הממוצע שמדדו מולדר ועמיתיו לפני הצלילות של ארבעה צוללני עילית. בחתירה למטה הוא יורד לכיוון שליש פחות, כמו שמדדו אנדרסון ועמיתיו בעצירת נשימה במאמץ עם הפנים במים, ובקצב שמתארים אליה ועמיתיו אצל צוללנים מאומנים. בנפילה החופשית הוא יורד שוב, לכיוון 42, הממוצע של הדופק הנמוך ביותר אצל מולדר. בחתירה למעלה הוא עולה קצת, כמו אצל מולדר, אבל בכמה, בחרנו אנחנו. אצל מולדר הדופק הנמוך ביותר הגיע בממוצע 52 שניות אחרי תחילת הצלילה, בצלילות של 82 שניות, וכאן הוא מגיע בקרקעית. כלי הדם בגפיים נסגרים לכיוון ירידה של 55.9 אחוזים, כמו זרימת הדם בעור אצל אנדרסון ושגטאי, והטחול מתכווץ ב-20 אחוזים, כמו אצל בקוביץ' ועמיתיו; את התזמון שלהם בחרנו.
לא. הריאות קטנות ביותר בקרקעית, בשנייה ה-43, והחמצן נמוך ביותר בפני המים, 40 שניות אחר כך. והנה הצלילה, רגע אחרי רגע.
על פני המים. ריאות מלאות, שישה ליטרים, והוא צף בכוח של 4.70 קילוגרמים. הוא נשם כרגיל, ולחץ החמצן בריאות 100 מילימטר כספית. בריאות יש 695 מיליליטר של חמצן ו-3,916 מיליליטר של חנקן.
בשנייה ה-11. הוא עובר את עומק הציפה הניטרלית, 10.6 מטרים. הלחץ 2.06 אטמוספירות, והריאות כבר מחזיקות רק 2.92 ליטרים. האוזניים דרשו השוואת לחצים מהמטר הראשון.
בשנייה ה-19. בעומק 19 מטרים המים כבר מושכים אותו למטה מספיק מהר, והוא מפסיק לחתור. מכאן הוא נופל, ומהירות הנפילה גדלה עם העומק.
בשנייה ה-43, בקרקעית. ארבעים מטרים, 4.98 אטמוספירות. הריאות מחזיקות 1.21 ליטרים, פחות מהנפח השיורי שלו: הוא עבר את הגבול של שנות החמישים בעשרה מטרים, ומעבר דם של 294 מיליליטר מספיק כדי לפצות. הוא כבד מהמים ב-2.62 קילוגרמים, ונפל בקצב של מטר לשנייה. לחץ החנקן בריאות 2,950 מילימטר כספית. ולחץ החמצן בדם? זה תלוי בשאלה שאף אחד לא מדד: כמה חמצן שורפת צלילה כזאת. בקצב של שחייה אופקית, החמצן שנשרף בירידה כמעט מבטל את מה שהדחיסה נותנת, והלחץ בקרקעית 95 מילימטר כספית. בחצי מהקצב, 197.
בשנייה ה-72. אחרי שחתר נגד המשקל שלו כל הדרך מהקרקעית, הוא עובר שוב את עומק הציפה הניטרלית, בדרך למעלה.
בשנייה ה-77. בעומק שישה מטרים הציפה חוזרת ונושאת אותו, והוא מפסיק לחתור. ועכשיו מגיעה הירידה החדה של לחץ החמצן.
בשנייה ה-83, בפני המים. בקצב של שחייה אופקית, לחץ החמצן בדם שלו 21 מילימטר כספית, עמוק בתוך רצועת איבוד ההכרה. בחצי מהקצב, 37, קרוב אליה. בשני המקרים זו הנקודה הנמוכה ביותר בכל הצלילה. צלילה לארבעים מטרים, על ריאות של שישה ליטרים, היא לא צלילה קלה.
לפני שממשיכים, סיכום קצר של מה שבנינו:
- עשרה מטרים של מים מוסיפים אטמוספירה. הגוף, שעשוי ממים, כמעט לא מרגיש את זה. רק הגז שבו מרגיש.
- חוק בויל תלוי ביחס של הלחצים. לכן עשרת המטרים הראשונים מחצים את הנפח, ובאוזניים כבר פחות ממטר מספיק כדי לכאוב.
- הגבול של שלושים מטרים נבע מהיחס בין נפח הריאות לנפח השיורי. דם שנכנס לבית החזה ודחיסת ריאות הזיזו אותו, והמחיר הוא מעיכת ריאות.
- מתחת לכעשרה מטרים הצוללן כבד מהמים, ומעבר לכעשרים הוא נופל בלי לחתור. העלייה מתחילה כבדה.
- בגוף יש כ-23 מיליליטר של חמצן לקילוגרם. שחייה של 200 מטרים עולה פי שלושה עד ארבעה מזה, ותגובת הצלילה חוסכת כרבע.
- הדחף לנשום מופעל בעיקר בידי הפחמן הדו-חמצני. היפרוונטילציה משתיקה אותו, כמעט בלי להוסיף חמצן.
- לחץ החמצן עולה בדרך למטה ויורד בדרך למעלה, וכשהריאות פתוחות, הנקודה הנמוכה נמצאת בפני המים.
- חנקן נטען לרקמות לפי חוק הנרי. צלילה אחת טוענת את המהירות; שעות של צלילות טוענות גם את האיטיות.
ארבע התשובות
אז הנה התשובות לצוללן מהפסקה הראשונה.
למה בעשרת המטרים הראשונים הוא חותר בכוח, ונדמה שהמים דוחפים אותו החוצה? כי הם באמת דוחפים. הגז בריאות ובחליפה מציף אותו, ועד שהוא נדחס מספיק, בעומק הציפה הניטרלית, כל מטר של ירידה הוא עבודה נגד הציפה.
למה אחרי עשרים מטרים הוא נופל? כי חוק בויל המשיך לדחוס את הגז, וחוק ארכימדס המשיך לחשב: גוף עם פחות גז הוא גוף כבד יותר מהמים. המהירות שלו נקבעת בידי הגרר, ובזכות הנפילה הזאת הוא חוסך חמצן יקר.
למה הריאות שלו לא נמעכות בארבעים מטרים, כשהחשבון אמר שלושים? כי בית החזה הוא לא בלון. דם נכנס לבית החזה ותופס את המקום של הגז, והגבול האמיתי הוא לא הנפח השיורי, אלא מה שהריאות מסוגלות לסבול.
ולמה המטרים המסוכנים ביותר הם האחרונים? כי העומק לא נותן חמצן, רק לחץ. בדרך למטה הלחץ הזה מסתיר כמה חמצן כבר נשרף, ובעשרת המטרים האחרונים, כשהלחץ יורד בחצי, החשבון מגיע. ואם הוא נשם מהר ועמוק לפני הצלילה, האזעקה שהייתה אמורה להזהיר אותו מושתקת.
הערה על המספרים
אף מספר בפוסט הזה לא נמדד בצוללן. כך נוצרו המספרים, ומה עדיין פתוח.
- מה חושב. כל ההמחשות, והשער, מריצות בדפדפן אותו קטע קוד בדיוק. צפיפות המים מחושבת ממשוואת המצב של UNESCO למי ים, לחץ אדי המים מהנוסחה של IAPWS, ורוויית ההמוגלובין מהנוסחה של סוורינגהאוס. לפני הפרסום הרצתי העתק של הקוד ב-Node, והוא משחזר את ארבעת ערכי הבדיקה של משוואת המי ים עד שמונה ספרות אחרי הנקודה, ואת שלושת ערכי הבדיקה של נוסחת הרוויה של IAPWS. חוקי בויל, ארכימדס, דלטון והנרי הם פיזיקה, לא הנחות.
- מה הנחה. הצוללן עצמו: 75 קילוגרמים, 15 אחוזי שומן, ריאות של 6.0 ליטרים ונפח שיורי של רבע, 5 ליטרים של דם עם 150 גרם של המוגלובין לליטר, ושרירים שהם 38.4 אחוזים ממשקל הגוף. הציפה של החליפה, שלושה קילוגרמים, היא הנחה, וכך גם הכלל שלפיו מפסיקים לחתור. שטח הגרר נגזר ממודל זרימה של נובאיס ועמיתיו, ומדידה בשחיינים צעירים נותנת פחות מחצי ממנו. קצב שריפת החמצן בחתירה לקוח משחייה אופקית מתחת למים (וינטי ועמיתיו), ואף אחד לא מדד אותו בצלילה עמוקה. מחציות הזמן של הרקמות בפרק על החנקן נבחרו להמחשה. ובהמחשה של הצלילה מבפנים, הדופק, כלי הדם והטחול מצוירים ולא מחושבים. הדופק מתחיל ב-79 לדקה, הממוצע שמדדו מולדר ועמיתיו לפני הצלילות; בחתירה למטה הוא יורד לכיוון שליש פחות, כמו אצל אנדרסון ועמיתיו, בקצב שמתארים אליה ועמיתיו; בנפילה החופשית הוא יורד לכיוון 42, הדופק הנמוך ביותר בממוצע אצל מולדר; ובחתירה למעלה הוא עולה קצת, בשיעור שבחרנו. כלי הדם בגפיים נסגרים והטחול מתכווץ בשיעורים שמדדו אנדרסון ושגטאי ובקוביץ’ ועמיתיו, בתזמון שבחרנו. ומתחת לנפח השיורי, הדם שנכנס לבית החזה ממלא בדיוק את מה שהגז מפנה: זה כלל, לא מדידה.
- מה מודל, ואיך הוא עומד מול מדידות. המודל של החמצן מתייחס לריאות ולדם כאל מאגר אחד, והמודל של הפחמן הדו-חמצני הוא קו ישר, בקצב שמדדו לינדהולם ולונדגרן. מול מדידות שלא שימשו לבניית צד החמצן שלו: אחרי היפרוונטילציה, עם תגובת הצלילה, המודל מגיע ללחץ חמצן של 26.9 מילימטר כספית אחרי 326 שניות, והצוללנים של לינדהולם ולונדגרן הגיעו לשם אחרי 284. בשחייה, עם ריאות של 7.3 ליטרים, הוא נותן 39 מילימטר כספית אחרי 47 שניות, ווינטי ועמיתיו מדדו 52, עם סטיית תקן של 10. בצלילה ל-60 מטרים, עם ריאות עילית פתוחות, הוא שם את החמצן בקרקעית גבוה מהמדידות של סקוט ועמיתיו, ואת החמצן ביציאה נמוך מהן או קרוב אליהן, לפי הקצב. כלומר: המספרים המוחלטים של החמצן טובים לכל היותר בכמה עשרות אחוזים, ובעומק גם לא בזה. הצורות, הלולאה של החמצן והסדר שבו מגיעים שני השעונים, לא תלויות בזה. ועוד השוואה אחת, לדופק שבהמחשה של הצלילה מבפנים: הוא מגיע לשפל שלו בקרקעית, בשנייה ה-43, ואצל הצוללנים של מולדר השפל הגיע בממוצע 52 שניות אחרי תחילת הצלילה, בצלילות של 82 שניות.
- מה נמדד, בידי אחרים. מעבר הדם, מהירויות הירידה והעלייה של קרופט והחמצן בסוף הצלילות שלו: שייפר ועמיתיו. גזי הדם בעומק: סקוט ועמיתיו ובוסקו ועמיתיו. הרוויה והדופק בצלילות: מולדר ועמיתיו ומקנייט ועמיתיו. תגובת הצלילה: אנדרסון ועמיתיו, לינדהולם ועמיתיו, חורנה ועמיתיו, אליה ועמיתיו ואגילר-גומס ועמיתיו. הטחול: שגטאי ועמיתיו ובקוביץ’ ועמיתיו. ההוצאה בשחייה: וינטי ועמיתיו. השלבים של עצירת הנשימה: קרוס ועמיתיו. הסטטיסטיקה מהתחרויות ומהסקרים: לינדהולם, אלינגר ועמיתיו ויו ועמיתיו. מחלת הדקומפרסיה: פיץ-קלארק, קושי ועמיתיו, ו-DAN על פאולב.
- מה קראתי רק בתקציר. את המאמרים של שייפר ועמיתיו, סקוט ועמיתיו (שניהם), לינדהולם ולונדגרן, לינדהולם (2007 ו-2008), אלינגר ועמיתיו, אנדרסון ועמיתיו (שלושתם), לינדהולם ועמיתיו (1999), חורנה ועמיתיו, שגטאי ועמיתיו (2001 ו-2005), בקוביץ’ ועמיתיו, הונג ועמיתיו, הופשטיין ועמיתיו, סקומב ועמיתיו, לוריג ועמיתיו, צ’ונג ועמיתיו, קרייג, ז’טה ועמיתיו, יאנסן ועמיתיו, וואנג ועמיתיו, סוורינגהאוס, פארקס, דוּייץ’ ועמיתיו, אילרדו ועמיתיו, קוימן ופונגאניס, פאלקה ועמיתיו, מקנייט ועמיתיו, ושני המאמרים של פיץ-קלארק. את המקרה של פאולב אני מכיר רק מהתיאור של DAN, ואת המאמר של בויקוט, דמנט והולדיין לא קראתי.
- מה פתוח. כמה חמצן נשרף בצלילה עמוקה אמיתית. באיזה עומק, ועד כמה, קורסות ריאות של אדם. למה אצל חלק מהצוללנים לחץ החמצן בקרקעית יורד במקום לעלות. ומה בדיוק שובר עצירת נשימה.
והערה אחרונה: שום דבר כאן אינו הנחיה לצלילה. אם צוללים, צוללים עם הדרכה, ואף פעם לא לבד.
הפוסט הזה מוקדש לאלון ריבקינד ולד״ר אורי ארגוב.
מקורות.
- K. Tetzlaff, F. Lemaitre, C. Burgstahler, J. A. Luetkens and L. Eichhorn, “Going to Extremes of Lung Physiology – Deep Breath-Hold Diving”, Frontiers in Physiology 12, 710429 (2021).
- K. E. Schaefer, R. D. Allison, J. H. Dougherty, C. R. Carey, R. Walker, F. Yost and D. Parker, “Pulmonary and circulatory adjustments determining the limits of depths in breathhold diving”, Science 162, 1020–1023 (1968).
- A. Patrician, Ž. Dujić, B. Spajić, I. Drviš and P. N. Ainslie, “Breath-Hold Diving – The Physiology of Diving Deep and Returning”, Frontiers in Physiology 12, 639377 (2021).
- G. Bosco et al., “Arterial Blood Gas Analysis in Breath-Hold Divers at Depth”, Frontiers in Physiology 9, 1558 (2018).
- T. Scott, H. van Waart, X. C. E. Vrijdag, D. Mullins, P. Mesley and S. J. Mitchell, “Arterial blood gas measurements during deep open-water breath-hold dives”, Journal of Applied Physiology 130, 1490–1495 (2021); T. K. M. Scott et al., “Arterial blood gas changes in progressively deeper breath-hold dives”, Journal of Applied Physiology 141, 180–189 (2026).
- E. Mulder, E. Schagatay and A. Sieber, “Using Underwater Pulse Oximetry in Freediving to Extreme Depths to Study Risk of Hypoxic Blackout and Diving Response Phases”, Frontiers in Physiology 12, 651128 (2021); J. C. McKnight et al., “When the human brain goes diving”, Philosophical Transactions of the Royal Society B 376, 20200349 (2021).
- J. R. Fitz-Clarke, “Lung compression effects on gas exchange in human breath-hold diving”, Respiratory Physiology & Neurobiology 165, 221–228 (2009); J. R. Fitz-Clarke, “Risk of decompression sickness in extreme human breath-hold diving”, Undersea & Hyperbaric Medicine 36, 83–91 (2009).
- P. Lindholm and C. E. Lundgren, “Alveolar gas composition before and after maximal breath-holds in competitive divers”, Undersea & Hyperbaric Medicine 33, 463–467 (2006); P. Lindholm, “Loss of motor control and/or loss of consciousness during breath-hold competitions”, International Journal of Sports Medicine 28, 295–299 (2007); P. Lindholm, A. Ekborn, D. Oberg and M. Gennser, “Pulmonary edema and hemoptysis after breath-hold diving at residual volume”, Journal of Applied Physiology 104, 912–917 (2008).
- J. Allinger, O. Melikhov and F. Lemaître, “Trends in competitive freediving accidents”, Diving and Hyperbaric Medicine 54, 301–307 (2024); E. Yu et al., “Occurrence and resolution of freediving-induced pulmonary syndrome in breath-hold divers: an online survey of lung squeeze incidents”, Diving and Hyperbaric Medicine 54, 281–286 (2024).
- L. M. Seccombe et al., “Features of glossopharyngeal breathing in breath-hold divers”, Journal of Applied Physiology 101, 799–801 (2006); S. H. Loring et al., “Transpulmonary pressures and lung mechanics with glossopharyngeal insufflation and exsufflation beyond normal lung volumes in competitive breath-hold divers”, Journal of Applied Physiology 102, 841–846 (2007); S. C. Chung et al., “Glossopharyngeal insufflation causes lung injury in trained breath-hold divers”, Respirology 15, 813–817 (2010).
- M. J. Parkes, “Breath-holding and its breakpoint”, Experimental Physiology 91, 1–15 (2006); T. J. Cross et al., “The Effects of Involuntary Respiratory Contractions on Cerebral Blood Flow during Maximal Apnoea in Trained Divers”, PLoS ONE 8, e66950 (2013); Z. Dujic et al., “Involuntary breathing movements improve cerebral oxygenation during apnea struggle phase in elite divers”, Journal of Applied Physiology 107, 1840–1846 (2009).
- A. B. Craig, “Summary of 58 cases of loss of consciousness during underwater swimming and diving”, Medicine and Science in Sports 8, 171–175 (1976).
- J. Andersson and E. Schagatay, “Arterial oxygen desaturation during apnea in humans”, Undersea & Hyperbaric Medicine 25, 21–25 (1998); J. P. Andersson, M. H. Linér, E. Rünow and E. K. Schagatay, “Diving response and arterial oxygen saturation during apnea and exercise in breath-hold divers”, Journal of Applied Physiology 93, 882–886 (2002); J. P. Andersson, M. H. Linér, A. Fredsted and E. K. Schagatay, “Cardiovascular and respiratory responses to apneas with and without face immersion in exercising humans”, Journal of Applied Physiology 96, 1005–1010 (2004).
- P. Lindholm, P. Sundblad and D. Linnarsson, “Oxygen-conserving effects of apnea in exercising men”, Journal of Applied Physiology 87, 2122–2127 (1999); R. K. Khurana et al., “Cold face test in the assessment of trigeminal-brainstem-vagal function in humans”, Annals of Neurology 7, 144–149 (1980); A. Elia, M. Gennser, P. S. Harlow and M. J. Lees, “Physiology, pathophysiology and (mal)adaptations to chronic apnoeic training: a state-of-the-art review”, European Journal of Applied Physiology 121, 1543–1566 (2021).
- E. Schagatay, J. P. Andersson, M. Hallén and B. Pålsson, “Selected contribution: role of spleen emptying in prolonging apneas in humans”, Journal of Applied Physiology 90, 1623–1629 (2001); D. Baković et al., “Spleen volume and blood flow response to repeated breath-hold apneas”, Journal of Applied Physiology 95, 1460–1466 (2003); E. Schagatay, H. Haughey and J. Reimers, “Speed of spleen volume changes evoked by serial apneas”, European Journal of Applied Physiology 93, 447–452 (2005); E. Schagatay, M. X. Richardson and A. Lodin-Sundström, “Size matters: spleen and lung volumes predict performance in human apneic divers”, Frontiers in Physiology 3, 173 (2012).
- M. A. Ilardo et al., “Physiological and Genetic Adaptations to Diving in Sea Nomads”, Cell 173, 569–580 (2018); D. Aguilar-Gómez et al., “Genetic and training adaptations in the Haenyeo divers of Jeju, Korea”, Cell Reports 44, 115577 (2025); S. K. Hong et al., “Daily diving pattern of Korean and Japanese breath-hold divers (ama)”, Undersea Biomedical Research 18, 433–443 (1991).
- G. Vinetti et al., “Energetics of Underwater Swimming in Apnea”, Medicine & Science in Sports & Exercise 57, 2053–2061 (2025).
- A. S. Blix, “Adaptations to deep and prolonged diving in phocid seals”, Journal of Experimental Biology 221, jeb182972 (2018); M. S. Tift and P. J. Ponganis, “Time Domains of Hypoxia Adaptation – Elephant Seals Stand Out Among Divers”, Frontiers in Physiology 10, 677 (2019); T. J. Wright and R. W. Davis, “The effect of myoglobin concentration on aerobic dive limit in a Weddell seal”, Journal of Experimental Biology 209, 2576–2585 (2006).
- G. L. Kooyman and P. J. Ponganis, “The physiological basis of diving to depth: birds and mammals”, Annual Review of Physiology 60, 19–32 (1998); K. J. Falke et al., “Seal lungs collapse during free diving: evidence from arterial nitrogen tensions”, Science 229, 556–558 (1985); S. K. Hooker et al., “Deadly diving? Physiological and behavioural management of decompression stress in diving mammals”, Proceedings of the Royal Society B 279, 1041–1050 (2012).
- K. Kohshi, P. J. Denoble, H. Tamaki, Y. Morimatsu, T. Ishitake and F. Lemaître, “Decompression Illness in Repetitive Breath-Hold Diving: Why Ischemic Lesions Involve the Brain?”, Frontiers in Physiology 12, 711850 (2021); A. E. Boycott, G. C. Damant and J. S. Haldane, “The Prevention of Compressed-air Illness”, Journal of Hygiene 8, 342–443 (1908).
- T. A. Glazer and S. A. Telian, “Otologic Hazards Related to Scuba Diving”, Sports Health 8, 140–144 (2016); D. Ü. Talas et al., “An insight to tympanic membrane perforation pressure through morphometry: A cadaver study”, Diving and Hyperbaric Medicine 51, 10–17 (2021); V. Hoffstein et al., “Maximum flow ratios at mid-vital capacity in young healthy adults”, Chest 90, 857–860 (1986).
- M. L. Novais et al., “The Effect of Depth on Drag During the Streamlined Glide: A Three-Dimensional CFD Analysis”, Journal of Human Kinetics 33, 55–62 (2012); T. M. Barbosa et al., “A Comparison of Experimental and Analytical Procedures to Measure Passive Drag in Human Swimming”, PLoS ONE 10, e0130868 (2015).
- Z. Wang et al., “Magnitude and variation of fat-free mass density: a cellular-level body composition modeling study”, American Journal of Physiology – Endocrinology and Metabolism 284, E267–E273 (2003); I. Janssen, S. B. Heymsfield, Z. Wang and R. Ross, “Skeletal muscle mass and distribution in 468 men and women aged 18–88 yr”, Journal of Applied Physiology 89, 81–88 (2000); M. Jetté, K. Sidney and G. Blümchen, “Metabolic equivalents (METS) in exercise testing, exercise prescription, and evaluation of functional capacity”, Clinical Cardiology 13, 555–565 (1990); J. W. Severinghaus, “Simple, accurate equations for human blood O2 dissociation computations”, Journal of Applied Physiology 46, 599–602 (1979); H. H. Billett, “Hemoglobin and Hematocrit”, in Clinical Methods, 3rd ed. (1990).
- F. J. Millero and A. Poisson, “International one-atmosphere equation of state of seawater”, Deep-Sea Research 28A, 625–629 (1981); N. P. Fofonoff and R. C. Millard, “Algorithms for computation of fundamental properties of seawater”, UNESCO Technical Papers in Marine Science 44 (1983); IAPWS R7-97(2012); J. Bellworthy et al., Journal of Experimental Biology 222, jeb186940 (2019); T. Ozer, I. Gertman, H. Gildor and B. Herut, Frontiers in Marine Science 8, 799457 (2022); המכון הבין-אוניברסיטאי למדעי הים באילת, הדף על מפרץ אילת.
- StatPearls: “Shallow Water Blackout”, “Physiology, Lung Capacity”, “Physiology, Oxygen Transport”, “Physiology, Blood Volume”, “Arterial Blood Gas Analysis”. DAN: “6 Methods to Equalize Your Ears”, ו-R. M. Wong, “Could breath-hold diving after scuba cause decompression sickness?". MRC Epidemiology Unit, Measurement Toolkit, שקילה הידרוסטטית. M. Kranzler, “The Dolphin Man: the phenomenon of Jacques Mayol”, Alert Diver Europe (2026). T. Larkin and G. Peoples, “The science behind a freediver’s 29-minute breath hold world record”, The Conversation (2025). Guinness World Records: שיא עצירת הנשימה הסטטית של AIDA, שיא עצירת הנשימה מתחת למים, והצלילה העמוקה ביותר ללא הגבלה. רשימת השיאים של Molchanovs (אוגוסט 2026).